
새동네 - 새에 관한 이야기
노래의 기능, 영역 방어와 세레나데 본문
지금까지 이 블로그는 노래가 어떻게 만들어지고, 개체와 종을 어떻게 구별하며, 공간과 시간에 따라 어떻게 달라지는지를 다뤘습니다. 이번 글부터는 질문을 하나 더합니다. 새는 이 노래로 실제로 무엇을 하는가. 연구자들은 새 노래의 기능을 크게 두 가지로 봅니다. 텃세권을 지키는 것, 그리고 짝을 유인하고 자극하는 것입니다. 두 기능 모두 그냥 그럴듯해 보이는 추측이 아니라, 실험으로 하나씩 검증된 것들입니다.
텃세권 방어 — 노래가 진짜로 침입자를 막는가
영역을 가진 수컷 명금류의 영역 안에서 같은 종의 노래를 재생하면, 그 수컷은 대개 공격적으로 반응합니다. 스피커나 그 옆에 놓인 가짜 새 모형을 직접 공격하기도 합니다. 이런 반응은 수컷이 경쟁자의 노래를 자신의 영역을 침범하려는 의도의 신호로 해석한다는 것을 보여줍니다. 그런데 이 반응만으로는 노래가 실제로 침입을 막는 데 도움이 되는지까지는 알 수 없습니다. 화를 내는 것과 쫓아내는 것은 다른 문제이기 때문입니다.
이 질문에 답한 것이 '스피커 교체' 실험입니다. 펜실베이니아의 연구자들은 Song Sparrow 수컷을 두 마리씩, 서로 인접하지 않은 자리에서 영역째로 제거했습니다(Nowicki et al. 1998). 빈 영역 한 쪽은 아무 처리도 하지 않은 무음 대조군으로 남겨두고, 다른 한 쪽에는 스피커 두 대를 설치해 Song sparrow 노래를 번갈아 방송하며 마치 수컷이 그 자리에 여전히 있는 것처럼 꾸몄습니다. 노래만으로 만든 이 가짜 수컷은 실제로 효과가 있었습니다. 스피커가 있는 영역은 무음 대조군보다 다른 개체에게 다시 점유될 가능성이 훨씬 낮았습니다. 노래는 잠재적 침입자에게 실질적인 '접근 금지' 신호로 작동하는 것입니다.
반대 방향의 실험도 있습니다. 플로리다의 연구자들은 Seaside Sparrow 수컷의 공기주머니 하나를 수술로 손상시켜 일시적으로 노래를 못 하게 만들었습니다(McDonald 1989). 공기주머니가 손상되면 발성에 필요한 호흡계 압력을 유지할 수 없기 때문입니다. 노래를 잃은 수컷은 영역을 지킬 능력도 함께 잃었습니다. 침입자가 이 수컷의 영역 일부 또는 전체를 차지하는 일이 대조군보다 훨씬 자주 일어났습니다. 공기주머니가 회복되어 다시 노래할 수 있게 되자, 대부분의 수컷은 잃었던 영역을 되찾았습니다. 노래를 더하거나 빼는 두 방향의 실험이 같은 결론을 가리킵니다. 노래는 텃세권 방어에서 장식이 아니라 실질적인 도구입니다.
[심화] 레퍼토리가 클수록 침입자가 더 오래 망설인다 — 보 게스트 가설
영국의 Great Tit를 대상으로 한 실험은 텃세권 방어에 노래의 또 다른 측면이 관여할 수 있다는 것을 보여줬습니다. 영역을 지키던 수컷을 제거하면, 그 영역에서 확성기로 노래를 계속 틀어주지 않는 한 다른 수컷이 하루 낮 안에(10시간 이내) 그 자리를 차지했습니다. 그런데 노래를 계속 틀어주면 경쟁자가 그 공백을 이용하기까지 걸리는 시간이 세 배 가까이(30시간) 늘어났습니다(Krebs 1977). 이 결과를 설명하기 위해 나온 것이 '보 게스트 가설'입니다. 다양한 노래 유형을 번갈아 부르는 레퍼토리가 큰 수컷은, 침입자에게 마치 그 영역에 여러 마리의 수컷이 있는 것처럼 들리게 해서 침입을 더 오래 망설이게 만든다는 생각입니다. 노래의 양뿐 아니라 다양성 자체가 방어 신호로 쓰일 수 있다는 뜻입니다.
노래가 줄어드는 시기에는 다른 발성이 그 역할을 대신하기도 합니다. 멕시코의 비번식지에서 개별 먹이 영역을 지키는 Mangrove Yellow Warbler는 이웃과 경계에서 마주치면 노래 대신 짧은 '칩' 소리를 빠르게 연달아 냅니다(Greenberg and Ortiz 1994). 파나마의 비번식기 개체를 대상으로 한 재생 실험에서, 이 새들은 같은 종의 칩 소리에는 공격적으로 반응했지만 같은 서식지에 사는 다른 종인 Northern Waterthrush의 칩 소리에는 반응하지 않았습니다(Neudorf and Tarof 1998). 노래가 아니어도, 종을 식별할 수 있는 발성이라면 텃세권 신호로 충분히 기능하는 것입니다.
짝 유인 — 노래가 암컷을 부른다는 증거
수컷이 짝을 유인하는 데 노래를 쓴다는 정황 증거 중 하나는 단순합니다. 짝이 없는 수컷이 짝이 있는 수컷보다 훨씬 더 자주 노래한다는 것입니다. 프랑스의 Common Nightingale 수컷은 짝이 없을 때는 밤에도 왕성하게 노래하지만, 짝을 얻으면 야간 노래를 그칩니다(Amrhein et al. 2002). Sedge Warbler도 짝짓기 직후 노래가 거의 사라지다시피 줄어듭니다(Catchpole 1973). 여러 종에서 반복적으로 확인된 패턴은 이렇습니다. 짝이 없는 수컷은 하루 종일 노래하고, 짝이 있는 수컷은 노래를 크게 줄이며, 짝을 잃으면 다시 왕성하게 노래합니다. 수컷의 노래량 자체가 그의 짝짓기 상태를 알려주는 지표인 셈입니다.
노래가 실제로 암컷을 끌어들이는지는 둥지 상자를 이용한 실험으로 직접 확인됐습니다. European Starling, European Pied Flycatcher, Northern House Wren 세 종 모두에서, 둥지 상자 입구 근처 스피커로 노래를 틀어준 상자와 무음 상자를 비교했습니다(Eriksson and Wallin 1986; Mountjoy and Lemon 1991; Johnson and Searcy 1996). 세 종 모두 암컷이 무음 상자보다 노래가 나오는 상자에 접근하거나 들어갈 확률이 훨씬 높았습니다. 암컷이 노래를 잠재적인 번식 기회를 알리는 신호로 실제로 사용한다는 뜻입니다.
실험실에서는 암컷의 반응을 더 정밀하게 잴 수 있습니다. 많은 종의 암컷은 교미할 준비가 되면 꼬리를 들어 올리는 정형화된 자세, 교미요구행동을 취합니다. Red-winged Blackbird 암컷에게 이 반응을 시험한 실험에서, 전형적인 붉은어깨찌르레기 노래를 들려줬을 때보다 흉내지빠귀가 그 노래를 불완전하게 흉내 낸 노래를 들려줬을 때 교미요구행동이 훨씬 적게 나타났습니다(Searcy and Brenowitz 1988). 암컷은 다른 종의 노래보다 자신의 종의 노래에 훨씬 강하게 반응했습니다. 이는 노래가 단순한 존재 신호를 넘어, 암컷이 성적으로 반응하는 구체적인 신호라는 것을 보여줍니다.
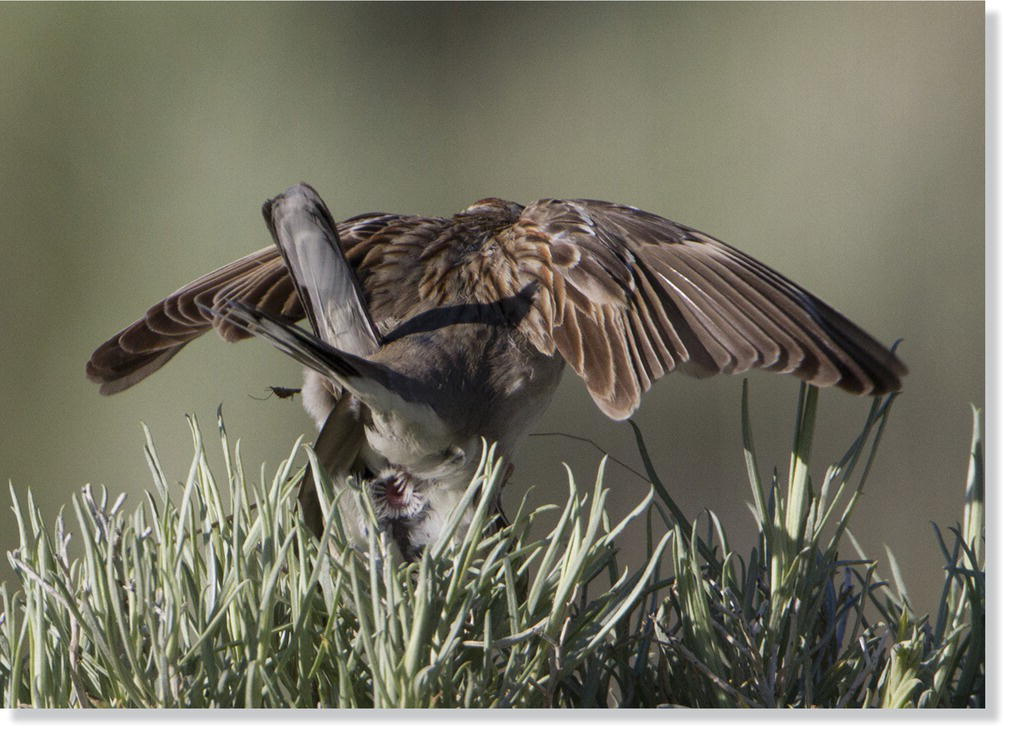
·성 선택의 두 경로: 노래의 진화는 자연선택이 아니라 성 선택을 통해 일어난다. 텃세권 방어 기능은 수컷 간의 직접적인 경쟁을 통해, 짝 유인 기능은 암컷의 선택을 통해 각각 다듬어진다. 하나의 노래가 두 압력을 동시에 받는 경우도 많다.
실제로 새의 종 인식 능력은 성적 동기와도 맞물려 있습니다. 호르몬으로 성적 욕구를 실험적으로 끌어올린 암컷 Song Sparrow와 Swamp Sparrow는 다른 종의 노래보다 자기 종의 노래에 훨씬 강하게 반응했고, 이때 두 종의 노래를 구별하는 단서는 음절 구조와 음절이 이어지는 방식이었습니다(Searcy and Marler 1981). 짝을 찾는 암컷에게 노래는 상대가 같은 종인지 확인하는 첫 관문이자, 동시에 성적인 신호이기도 한 셈입니다.
요약
새 노래의 두 가지 주요 기능, 텃세권 방어와 짝 유인은 모두 실험으로 뒷받침됩니다. 스피커만으로 만든 가짜 수컷이 실제 침입을 막아냈고, 노래를 잃은 수컷은 영역도 함께 잃었습니다. 레퍼토리가 클수록 침입자를 더 오래 망설이게 한다는 보 게스트 가설도 텃세권 방어의 또 다른 층위를 보여줍니다. 짝 유인 쪽에서는 짝 없는 수컷이 더 많이 노래한다는 정황, 노래하는 둥지 상자에 암컷이 더 많이 모인다는 실험, 암컷이 다른 종의 노래보다 자기 종의 노래에 훨씬 강하게 반응한다는 결과가 함께 노래를 성적 신호로 가리킵니다. 두 기능 모두 확인됐다면, 다음 질문은 자연스럽게 이어집니다. 같은 종 안에서도 노래는 개체마다 다른데, 그 개체간 차이는 청자에게 또 무엇을 알려줄까요.
다음 글에서는 노래 산출량, 수행 능력, 레퍼토리 크기 같은 개체 간 차이가 실제로 무엇을 신호하는지를 다루겠습니다.
참고 자료
Cornell Lab of Ornithology, Handbook of Bird Biology, 10장 「새 발성 행동」 10.6 「새 노래의 기능」.
Gill, B. A. & Prum, R. O., Ornithology, 4th ed. (W. H. Freeman, 2019), 8장 8.10 「노래와 배우자」.
Nowicki, S., Searcy, W. A., & Hughes, M. (1998). The territory defense function of song in song sparrows: a test with the speaker occupation design. Behaviour, 135, 615–628.
McDonald, M. V. (1989). Function of song in Scott's Seaside Sparrow, Ammodramus maritimus peninsulae. Animal Behaviour, 38, 468–485.
Krebs, J. R. (1977). The significance of song repertoires: the Beau Geste hypothesis. Animal Behaviour, 25, 475–478.
Greenberg, R. & Ortiz, J. S. (1994). Interspecific defense of pasture trees by wintering Yellow Warblers. Auk, 111, 672–682.
Neudorf, D. L. & Tarof, S. A. (1998). Use of chip calls by wintering Yellow Warblers in territorial contexts. Journal of Field Ornithology, 69, 30–36.
Amrhein, V., Korner, P., & Naguib, M. (2002). Nocturnal and diurnal singing activity in the nightingale: correlations with mating status and breeding cycle. Animal Behaviour, 64, 939–944.
Catchpole, C. K. (1973). The functions of advertising song in the Sedge Warbler (Acrocephalus schoenobaenus) and the Reed Warbler (A. scirpaceus). Behaviour, 46, 300–320.
Eriksson, D. & Wallin, L. (1986). Male bird song attracts females—a field experiment. Behavioral Ecology and Sociobiology, 19, 297–299.
Mountjoy, D. J. & Lemon, R. E. (1991). Song as an attractant for male and female European Starlings, and the influence of song complexity on their response. Behavioral Ecology and Sociobiology, 28, 97–100.
Johnson, L. S. & Searcy, W. A. (1996). Female attraction to male song in house wrens (Troglodytes aedon). Behaviour, 133, 357–366.
Searcy, W. A. & Brenowitz, E. A. (1988). Sexual differences in species recognition of avian song. Nature, 332, 152–154.
Searcy, W. A. & Marler, P. (1981). A test for responsiveness to song structure and programming in female sparrows. Science, 213, 926–928.
'행동 > 노래' 카테고리의 다른 글
| 특별한 유형들 -새벽합창, 암컷 노래, 듀엣, 모창, 비행 노래 (0) | 2026.10.12 |
|---|---|
| 노래의 기능 - 노래를 못하면 개체 질質도 떨어지는가? (0) | 2026.10.12 |
| 시링크스, 그 이후의 소리 변조 (0) | 2026.10.12 |
| 노래는 시간이 지나면 어떻게 달라지는가 (0) | 2026.10.12 |
| 노래에 새겨진 지리 (0) | 2026.10.09 |