
새동네 - 새에 관한 이야기
붉은가슴도요의 원격 촉각 — 보지 않고 먹이를 찾는 압력 감지 메커니즘 본문
원문: Piersma, T., van Aelst, R., Kurk, K., Berkhoudt, H., & Maas, L. R. M. (1998). A new pressure sensory mechanism for prey detection in birds: the use of principles of seabed dynamics? Proceedings of the Royal Society B, 265(1404), 1377–1383.
DOI: 10.1098/rspb.1998.0445
앞서 부리와 혀 글과 균형감각과 촉각 글에서 짧게 언급했던 붉은가슴도요(Red Knot)의 원격 촉각 이야기를, 이번에는 원문 논문을 따라가며 실험 설계와 수치까지 자세히 짚어보겠습니다.
붉은가슴도요는 왜 특별한가 — 움직이지 않는 먹이를 찾아야 하는 새
모래나 갯벌 속에 숨은 먹이를 찾는 새들은 저마다 다른 방법을 씁니다. 개똥지빠귀 같은 육상 조류는 소리로 땅속 지렁이를 찾고(Montgomerie and Weatherhead 1997), 검은머리물떼새는 부리를 직접 대어 조개를 더듬어 찾습니다(Hulscher 1982). 도요류(Calidris속) 대부분은 모래 속에서 움직이는 무척추동물이 만드는 진동을 감지합니다(Gerritsen and Meijboom 1986). 그런데 붉은가슴도요는 사정이 다릅니다. 번식지인 북극 툰드라에서는 눈에 보이는 곤충을 잡아먹지만, 나머지 계절을 보내는 해안 갯벌에서는 거의 전적으로 조개류와 갑각류를 먹는데, 이런 먹이는 대부분 움직임이 거의 없어 진동 신호를 낼 일이 없습니다. 그런데도 붉은가슴도요는 3cm 깊이에 묻힌 조개를 '무작위 탐색'이나 '직접 접촉' 모델이 예측하는 것보다 7~8배나 자주 찾아냅니다(Piersma et al. 1995). 저자들은 이 수치가 알려지지 않은 추가적인 감각 능력이 있다는 것을 뜻한다고 보고, 이 논문에서 그 정체를 파고듭니다.
실험 설계 — 보이지 않는 물체를 구별하도록 새를 훈련시키다
연구팀은 1995년 10월 와덴해에서 포획한 붉은가슴도요 네 마리를 대상으로, 오퍼런트 조건화(operant conditioning) 기법을 이용했습니다. 지름 15cm, 깊이 9.5cm의 양동이에 젖은 모래를 채우고, 절반에는 아무것도 묻지 않고 나머지 절반에는 먹이나 돌을 묻어 두었습니다. 새는 15초 동안 양동이에 부리를 넣어 탐색한 뒤, 물체가 있다고 판단하면 오른쪽 먹이통으로, 없다고 판단하면 왼쪽 먹이통으로 가도록 훈련받았습니다. 정답을 맞히면 먹이 알갱이로 보상했습니다. 관찰자는 조사자가 무의식적으로 신호를 주는 '영리한 한스 효과'를 막기 위해 실험 내내 소리를 내지 않고 일방향 스크린 뒤에 숨어 있었습니다. 양동이를 새 앞에 내놓고 거둬들이는 과정도 조명 신호로 자동화해, 새가 사람의 손이나 움직임을 단서로 삼을 수 없도록 했습니다.
결정적 실험 — 살아있는 조개에서 돌멩이, 마른 모래까지
훈련은 단계적으로 어려워졌습니다. 처음에는 조개(Macoma balthica)를 얕게 눕혀 묻어 쉽게 찾을 수 있게 했고, 다음에는 자연 상태처럼 세워서 3.5cm 깊이에, 그다음에는 붉은가슴도요의 부리(3.2~3.5cm)와 혀가 닿을 수 없는 5cm 깊이에 묻었습니다. 그런데도 네 마리 모두 유의미하게 구별해 냈습니다. 핵심 실험은 그다음이었습니다. 살아있는 조개 대신, 비슷한 크기와 모양의 '돌멩이'를 5cm 깊이에 묻은 것입니다. 돌은 움직이지도, 진동을 내지도, 냄새나 맛이 있지도 않습니다. 그런데도 네 마리 모두 결국 유의미한 수준으로 돌이 묻힌 양동이를 골라냈습니다. 마지막으로 같은 조개를 마른 모래에 5cm 깊이로 묻어 시험했는데, 이번에는 328번을 시도해도 네 마리 모두 정답률이 우연 수준(50%)에서 벗어나지 못했습니다.
[심화] 숫자로 보는 난이도 — 훈련 120번 vs. 돌멩이 500번대
논문에 실린 표를 보면 과제가 어려워질수록 유의미한 구별에 도달하기까지 필요한 시도 횟수가 뚜렷하게 늘어납니다. 얕게 눕혀 묻은 조개로 하는 초기 훈련에서는 새 네 마리가 각각 104~120번 만에 구별에 성공했습니다. 하지만 부리가 닿지 않는 5cm 깊이에 돌을 묻은 핵심 실험에서는 168~528번을 시도해야 했고, 가장 오래 걸린 개체는 500번을 훌쩍 넘겼습니다. 그리고 마른 모래 실험에서는 조개를 묻었는데도 328번을 시도한 뒤에도 네 마리 모두 여전히 우연 수준에 머물러, 논문은 이를 아예 "구별하지 못함(n.s.)"으로 기록했습니다. 훈련용 얕은 조개 과제를 실험 뒤에 다시 반복했을 때는 다시 168~216번 만에 정답률을 회복해, 새들이 지쳤거나 흥미를 잃은 것이 아니라 과제 자체가 어려웠다는 것을 보여줍니다.
무엇을 배제할 수 있는가 — 소리·냄새·진동이 아니라는 증거
돌멩이를 찾아낸다는 결과 하나가 많은 가능성을 지워버립니다. 돌은 시각적으로 보이지 않고, 냄새나 맛도 없고, 움직이지 않으니 진동도 만들지 않습니다. 실제로 조개와 돌을 함께 섞어 놓아도 붉은가슴도요는 돌까지 캐냈습니다. 남은 후보는 온도 차이, 전자기장, 그리고 음향(일종의 '음파 탐지') 정도인데, 저자들은 돌이 주변 모래와 온도·전자기적 성질이 같다고 보고 그 두 가능성도 제외합니다. 음향 가설도 이론적으로 성립하기 어렵습니다. 붉은가슴도요가 부리로 모래를 찌르는 속도는 초당 약 10회인데, 10Hz 진동의 파장은 100m가 넘어(Dusenbery 1992) 몇 센티미터짜리 물체를 구별하는 데는 애초에 쓸 수 없는 파장입니다. 결국 남는 설명은 부리가 퇴적물을 파고들 때 단단한 물체 방향으로 만들어지는 압력의 변화를 감지한다는 것뿐입니다.
부리 끝의 감각 기관 — 허브스트 소체의 정교한 배치
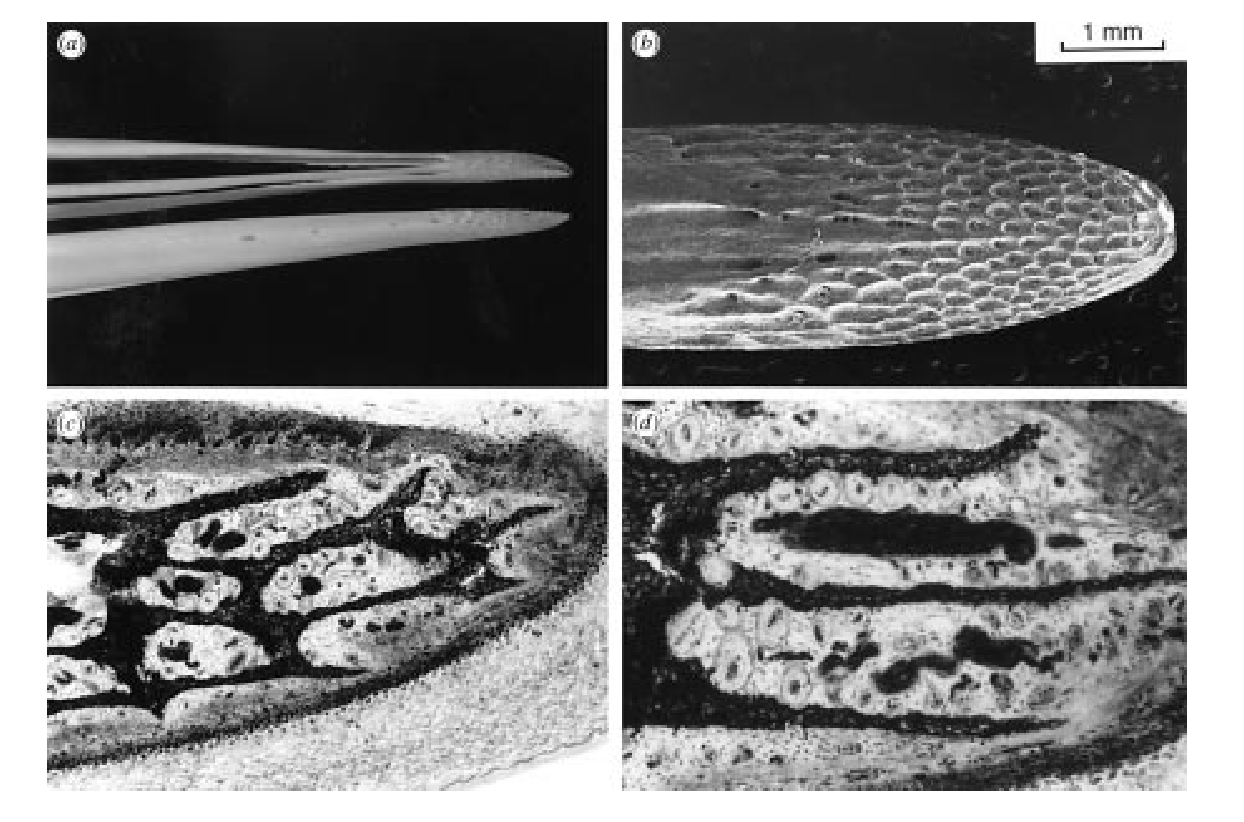
연구팀은 붉은가슴도요 부리 끝을 얇게 잘라 단면을 현미경으로 들여다봤습니다. 부리 끝에서 2~4mm 떨어진 지점에 폭 112~200마이크로미터, 길이 최대 300마이크로미터의 작은 홈('감각 구멍')이 위턱에 140개, 아래턱에 145개나 뚫려 있었습니다. 각 구멍 안에는 압력 변화의 가속도를 감지하는 양파 모양의 허브스트 소체(Herbst corpuscle)가 두 줄로 최대 25개씩, 중심의 신경축삭 다발을 둘러싸고 배열되어 있었습니다. 소체 하나의 크기는 폭 35~52마이크로미터, 길이 74~88마이크로미터였습니다. 흥미로운 점은 이 구멍들이 좌우 대칭이 아니라 앞쪽을 향해 비스듬히 파여 있다는 것으로, 이는 사방의 진동을 고르게 감지하는 다른 도요류의 좌우대칭형 구멍과는 뚜렷이 다른 구조입니다. 이 밖에도 입천장 앞쪽에서는 이전 연구들이 놓쳤던 아주 작은(10~15마이크로미터) 메르켈·그랜드리형 감각 소체도 새로 확인했습니다.
메커니즘 — 압력장 모델과 갈라지는 물흐름
부리가 젖은 모래를 찌르면, 그 지점을 중심으로 압력이 사방으로 퍼져 나가다가 거리에 반비례해 약해집니다. 물이 거의 압축되지 않는 젖은 모래에서는 이 압력 변화가 마른 모래보다 훨씬 멀리, 훨씬 천천히 퍼집니다. 이 압력장 한가운데 단단한 조개껍데기 같은 장애물이 있으면, 물의 흐름이 그것을 피해 돌아가야 하므로 원래는 사방으로 고르게 퍼지던 압력 패턴이 그 지점에서만 일그러집니다. 부리 끝의 허브스트 소체가 감지하는 것이 바로 이 '일그러진 부분'이며, 그 압력 차이가 어느 방향으로 기우는지를 읽으면 먹이가 있는 방향까지 알 수 있습니다. 이 압력장은 유체역학의 다르시 법칙과 푸아송 방정식으로 근사할 수 있는데(Lamb 1932), 부리가 곧고 두꺼우며 끝까지 고르게 가늘어지는 붉은가슴도요 특유의 부리 모양이 이런 균일한 압력장을 만드는 데 유리하게 작용하는 것으로 보입니다.
[심화] 왜 반복해서 찌르는가 — 모래를 다지며 압력을 증폭하는 정류 메커니즘
한 번만 찔러도 압력 패턴은 만들어지는데, 붉은가슴도요는 왜 같은 자리를 열 번 넘게 반복해서 찌를까요. 저자들은 썰물 때의 모래가 완전히 다져지지 않고 느슨하게 쌓인 상태라는 점에 주목합니다. 부리가 찌를 때마다 모래 틈 사이 물의 압력이 순간적으로 높아지면서, 위에 쌓인 모래 알갱이의 무게를 버티던 힘의 균형이 깨지고, 모래 알갱이들이 살짝 들뜬 채 다시 가라앉으며 더 촘촘하게 재배열됩니다. 문제는 이 물이 0.1초 남짓한 찌르기 시간 동안 빠져나갈 틈이 없다는 것으로, 그 결과 물이 빠지지 못한 채 압력만 남아 쌓이고, 다음 찌르기마다 이 잔류 압력이 '펌프질하듯' 조금씩 더 증폭됩니다. 이는 바다 밑바닥이 파도의 반복된 압력에 눌려 물러지는 액상화(quicksand) 현상과 원리가 같습니다(Bjerrum 1973). 즉 붉은가슴도요는 모래를 반복해서 다지는 행동 자체로, 원래는 감지하기 힘들 만큼 약했던 압력 신호를 스스로 증폭시켜 감지 가능한 수준까지 끌어올리는 셈입니다.
결론 — 새로운 감각 채널의 발견
이 논문이 내리는 결론은, 시각·청각·후각·미각·진동 감지 중 어느 것으로도 설명되지 않는, 그전까지 알려지지 않았던 감각 경로가 실재한다는 것입니다. 이 발견은 오래된 현장 관찰 하나도 새롭게 설명해 줍니다. 모어캠 만(Morecambe Bay)의 붉은가슴도요는 표면에 물기가 살짝 남은 모래 바닥을 선호하고, 물이 잘 빠지는 건조한 지역은 피한다는 관찰이었는데(Prater 1972), 저자들은 이것이 단순한 습성이 아니라 이 압력 감지 메커니즘이 작동하려면 반드시 젖은 모래가 필요하기 때문이라고 설명합니다. 즉 이 새들이 먹이터를 고를 때는 먹이의 양뿐 아니라, 자신만의 '압력 이미징' 감각이 작동할 수 있는 모래 입자 크기와 수분 조건까지 함께 고려하고 있는 셈입니다.
[심화] 이 논문 이후 — 도요새만의 이야기가 아니었다
1998년 이 논문은 붉은가슴도요 한 종의 특이한 능력을 보고하는 데 그쳤지만, 이후 연구는 이 '부리끝기관(bill-tip organ)'이 훨씬 더 넓은 이야기라는 것을 밝혀냈습니다. 2010년 커닝엄 등은 도요류와는 계통적으로 멀리 떨어진 저어새·따오기 무리(Threskiornithidae)의 부리에서도 똑같이 허브스트 소체가 밀집된 감각 구멍 구조가 독립적으로 진화했다는 것을 확인했고(Cunningham et al. 2010), 뒤이어 날지 못하는 뉴질랜드의 키위에서도 같은 구조가 발견되었습니다. 2020년에는 화석 뼈에 남은 미세한 혈관·신경 통로 구멍의 흔적을 분석해, 이 원격 촉각 기관이 이미 백악기, 즉 공룡 시대 조류에서부터 존재했다는 것이 밝혀졌습니다(du Toit, Chinsamy and Cunningham 2020). 붉은가슴도요의 압력 감지 능력은 한 종의 진기한 재주가 아니라, 새 무리 여러 갈래가 저마다 진흙과 모래 속 먹이를 찾기 위해 거듭 되살려 쓴, 아주 오래되고 뿌리 깊은 감각 체계였던 셈입니다.
맺음말
네 마리 새와 모래 담긴 양동이로 시작한 이 실험은, 결국 유체역학 방정식과 백악기 화석까지 이어지는 이야기로 확장되었습니다. 저자들은 논문 말미에서 이 발견이 "특정 서식지에서 특정 자원을 성공적으로 활용하는 능력이, 그때까지 발견되지 않았던 독자적인 감각 경로를 만들어냈다는 것을 아름답게 보여준다"고 적었습니다. 보이지 않는 것을 "본다"는 것이 반드시 시각을 의미하지는 않는다는 사실을, 붉은가슴도요의 부리 끝이 증명해 준 셈입니다.
원문 서지정보
Piersma, T., van Aelst, R., Kurk, K., Berkhoudt, H., & Maas, L. R. M. (1998). A new pressure sensory mechanism for prey detection in birds: the use of principles of seabed dynamics? Proceedings of the Royal Society B, 265(1404), 1377–1383. DOI: 10.1098/rspb.1998.0445
Cunningham, S. J., Alley, M. R., Castro, I., Potter, M. A., Cunningham, M., & Pyne, M. J. (2010). Bill morphology of ibises suggests a remote-tactile sensory system for prey detection. The Auk, 127(2), 308–316. (부리끝기관이 따오기 무리에서 독립적으로 진화했음을 밝힌 후속 연구)
du Toit, C. J., Chinsamy, A., & Cunningham, S. J. (2020). Cretaceous origins of the vibrotactile bill-tip organ in birds. Proceedings of the Royal Society B, 287(1940), 20202322. (부리끝기관의 기원이 백악기까지 거슬러 올라간다는 것을 보인 후속 연구)
'새와 사람 > 논문' 카테고리의 다른 글
| 새는 어떻게 들숨과 날숨 모두에서 숨을 쉬는가 — 새 호흡계의 공기 흐름 (0) | 2026.09.18 |
|---|---|
| 뉴튼 2법칙으로 설명하는 양력의 원리 (0) | 2026.09.14 |
| 자기장 두 성분만으로 위치를 안다 — 유라시아개개비의 가상 이동 실험 (0) | 2026.09.09 |
| 새의 눈에 자기장은 어떻게 비칠까 — 크립토크롬 시각 패턴의 정밀도 (0) | 2026.09.09 |
| 조류의 자기감각 — 서로 다른 임무를 위한 두 개의 수용체 (0) | 2026.09.07 |